



近日,中国科学院青岛生物能源与过程研究所王士安团队在Proceedings of the National Academy of Sciences(PNAS)期刊发表了题为"A conserved E3 ubiquitin ligase rewires carotenoid, sterol, and lipid metabolism in *Xanthophyllomyces dendrorhous"的研究论文。该研究以产虾青素法夫酵母(Xanthophyllomyces dendrorhous*)为模型,鉴定到一个保守的RING型E3泛素连接酶PTR1(Pleiotropic Regulator 1),其作为核心调控枢纽,通过泛素化修饰协同调控类胡萝卜素、甾醇和脂质三条代谢途径。研究揭示了PTR1与White Collar复合体(WCC)形成双向调控环路维持类胡萝卜素稳态的分子机制,并拓展了PTR1介导的更广泛调控网络。
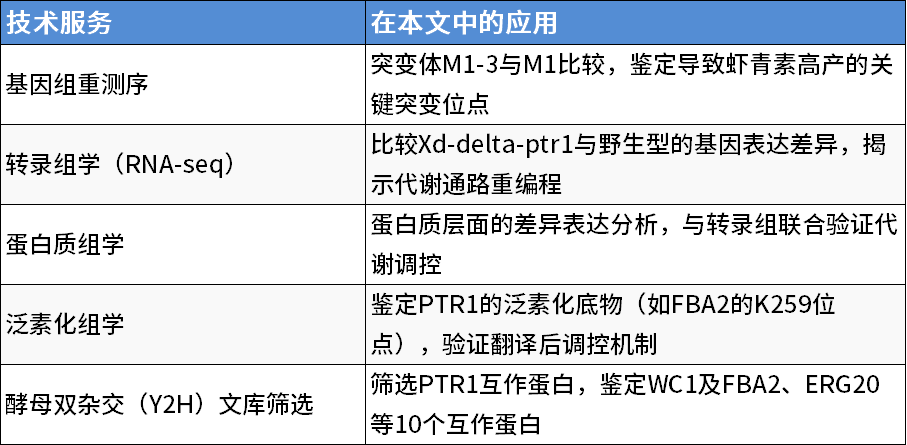
欧易生物为本研究提供了基因组重测序、转录组学、蛋白质组学、泛素化组学分析及酵母双杂交(Y2H)文库筛选等服务。
类胡萝卜素、甾醇和脂质是真核细胞中三类重要代谢物,它们共享乙酰辅酶A(acetyl-CoA)来源的共同前体,却各自承担不同的生理功能:类胡萝卜素是强效抗氧化剂和光保护剂;甾醇维持膜流动性和信号转导;脂质则作为能量储存和膜结构组分。然而,细胞如何在这三条相互竞争的代谢途径之间协调代谢通量、维持稳态,目前尚不清楚。
法夫酵母(X. dendrorhous)是一种能够天然合成虾青素(astaxanthin)的红色酵母,同时还产生麦角甾醇(ergosterol)和新星甾醇(stellasterol)。这种同时活跃的三条代谢途径使其成为研究代谢通量分配的理想模型系统。更重要的是,虾青素积累产生的红色表型,便于筛选调控突变体。
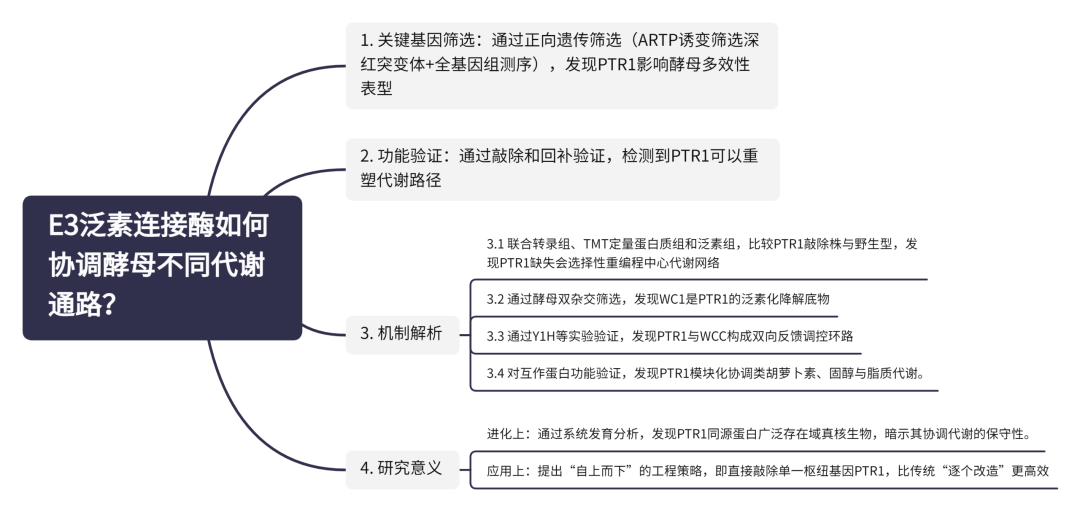
1. ARTP诱变筛选鉴定到E3泛素连接酶PTR1为多效性调控因子
为提高法夫酵母的虾青素产量,研究者在野生型菌株CBS 6938的衍生突变体M1基础上,采用常温常压等离子体(ARTP)诱变技术进行第二轮筛选,获得了虾青素含量较野生型提高8.4倍的深红色突变体M1-3(图1A)。
通过对M1-3进行全基因组重测序(与亲本M1比较),共鉴定到94个SNP和36个Indel。其中,两个基因发生了无义突变:一个编码假定蛋白(CDZ98141.1),另一个编码E3泛素连接酶(CED83815.1)。在野生型菌株中破坏CED83815.1基因后,成功重现了深红色表型,虾青素含量较野生型提高了245%(1198 μ/g DCW vs. 347 μg/g DCW)(图1B-C)。关键验证:在野生型背景中特异性敲除该基因(构建Xd-Δptr1),完全重现了深红色表型,虾青素含量提升245%(图 1B-C)。更重要的是,该敲除不仅影响虾青素,还导致麦角甾醇和星鱼甾醇大幅上升(图 1D),同时总脂和甘油三酯下降,但多不饱和脂肪酸(PUFA)比例显著增加(图 1E-G)。
结论:该基因(命名为PTR1)同时负调控三条代谢通路,是一个“多效性调节枢纽”。
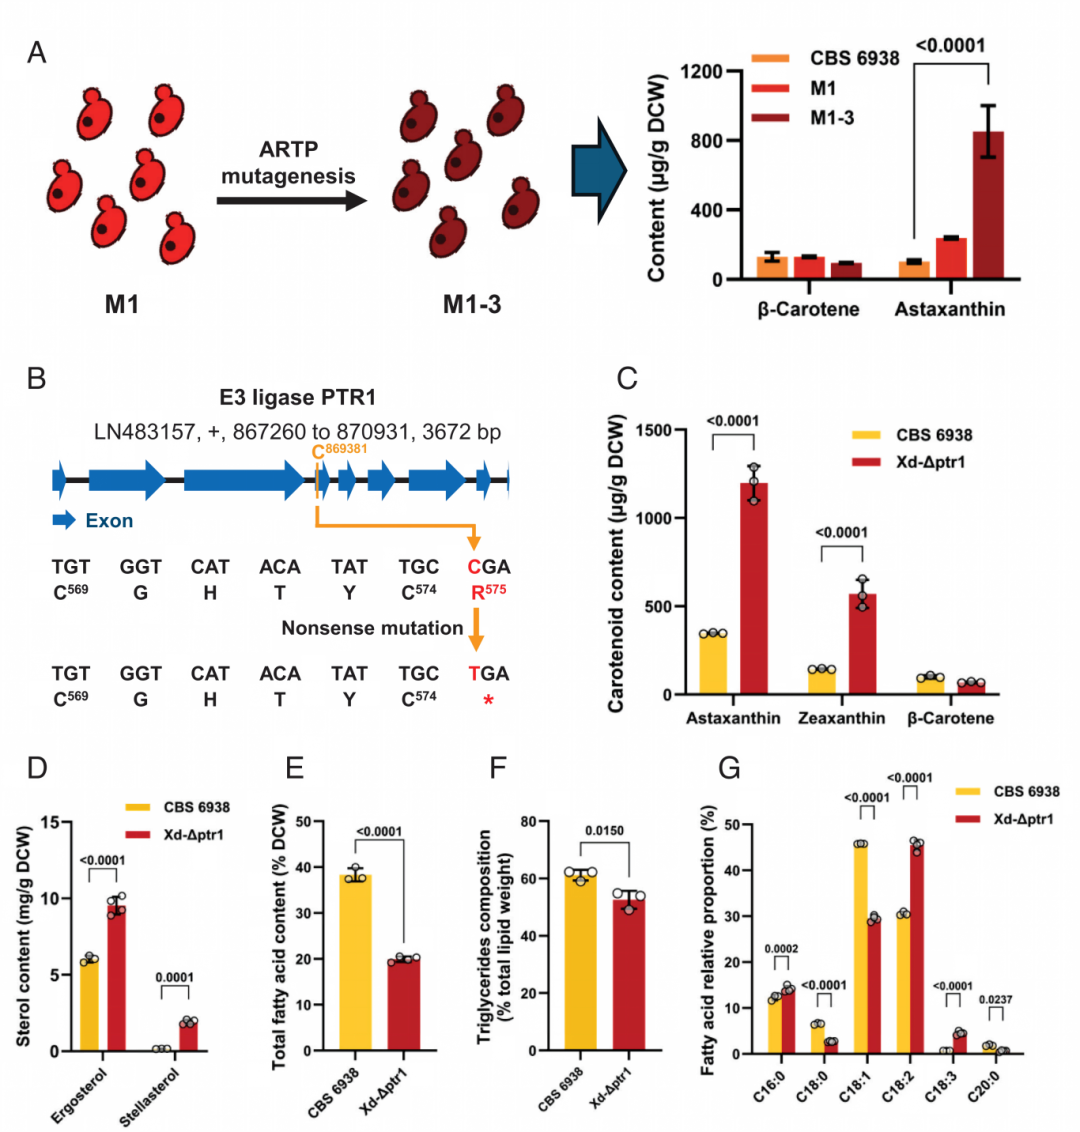
图1 | PTR1调控法夫酵母中类胡萝卜素、甾醇和脂质代谢。(A) ARTP诱变流程及突变体中beta-胡萝卜素和虾青素含量;(B) PTR1基因的无义突变;(C) HPLC检测虾青素、玉米黄质和beta-胡萝卜素含量;(D) GC检测麦角甾醇和新星甾醇含量;(E) 总脂含量;(F) 甘油三酯组成;(G) 脂肪酸组成。
2. PTR1在真核生物中具有广泛的结构保守性
研究者通过RACE技术获得PTR1的全长cDNA,发现其编码蛋白包含两个保守结构域:负责E3酶活性的 LRFrpt2(RING指结构域) 和负责结合底物的 LONBD(LON蛋白酶底物结合域)(图2A)。
系统发育分析显示,具有LRFrpt2-LONBD双结构域的PTR1同源蛋白广泛存在于从原生生物、藻类、真菌到哺乳动物的各类真核生物中(图2B)。
结论:尽管该蛋白结构高度保守,但在真菌演化中呈现谱系特异性丢失(例如在酿酒酵母、白色念珠菌及某些专性寄生担子菌中缺失),提示不同真菌在进化中对代谢调控模块进行了重编程或功能替代。
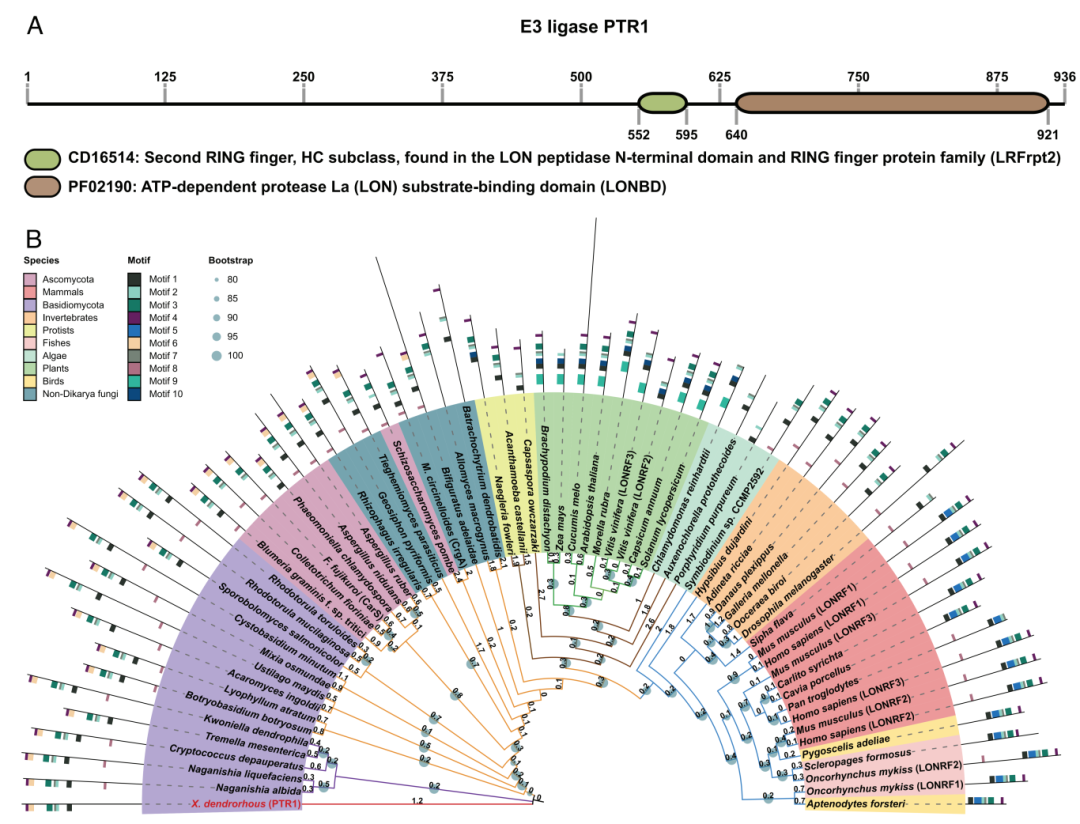
图2 | PTR1的保守结构域分析及跨真核谱系的系统发育树。
3. 多组学分析揭示PTR1重塑全局代谢的分子基础
研究者对PTR1破坏菌株(Xd-delta-ptr1)和野生型菌株进行了转录组学和蛋白质组学联合分析(图3),揭示了代谢重编程的分子基础:显著上调的通路集中在类胡萝卜素生物合成、甲羟戊酸(MVA)途径、麦角甾醇合成以及细胞周期G1/S和G2/M转换(图 3D)。显著下调的通路集中在脂肪酸β-氧化、三羧酸(TCA)循环、氮代谢和糖酵解/糖异生(图 3E)。
此外,PTR1 对三条通路实施差异化调控:选择性激活类胡萝卜素和甾醇的下游合成酶(HMGR、Crt、ERG),同时重塑脂质代谢(激活合成与降解、诱导 FAD3 增加 PUFA)。这种“节点式”调控模式排除了对整条 MVA 途径的无差别激活。
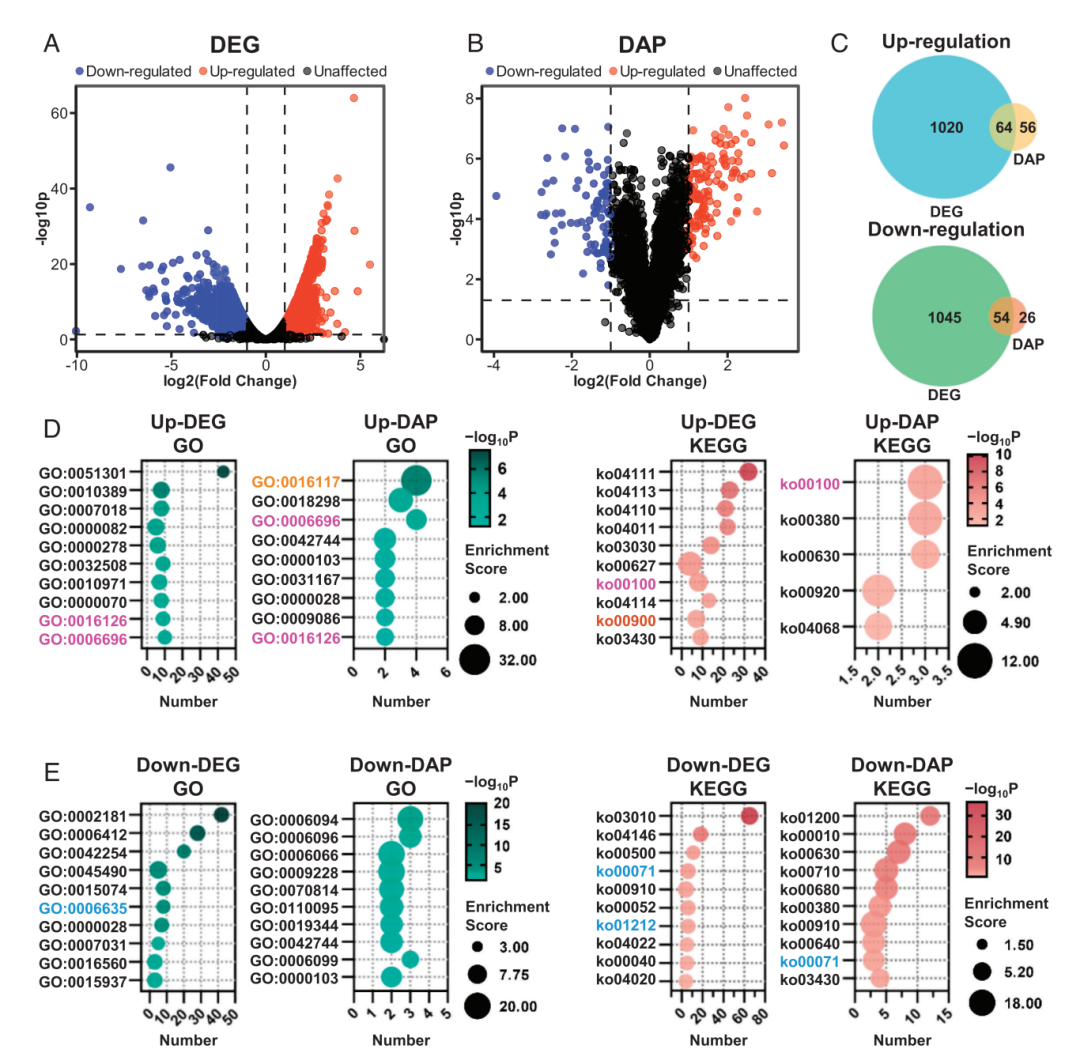
图3 | PTR1敲除菌株Xd-delta-ptr1与野生型菌株CBS 6938的转录组和蛋白质组分析。(A) 基因表达火山图;(B) 蛋白表达火山图;(C) 上调和下调DEGs与DAPs的Venn图;(D) 上调DEGs和DAPs的GO和KEGG富集分析;(E) 下调DEGs和DAPs的GO和KEGG富集分析。
4. PTR1与WCC形成双向调控环路维持类胡萝卜素稳态
为进一步揭示PTR1通过什么底物调控类胡萝卜素,研究者整合泛素组学+蛋白质组学,筛选出表达量上升且泛素化水平下降的6个候选蛋白(包括CrtI和WC1)。酵母双杂交(Y2H) 证实,PTR1仅与WC1发生强物理互作,而WC1是转录因子WCC(白领复合体)的关键成员(图4A)。
过表达WC1和WC2的菌株(Xd-WCC)中,虾青素和beta-胡萝卜素含量显著升高,但甾醇和脂肪酸总量无显著变化(图4B-D),表明WC1特异性调控类胡萝卜素合成。进一步研究发现:
PTR1通过泛素化介导WC1的靶向降解,从而抑制类胡萝卜素合成;
在WC2破坏菌株(Xd-delta-wc2)中,PTR1的转录水平显著上调(qRT-PCR验证);
酵母单杂交(Y1H)实验证实WCC可直接结合PTR1启动子区域,激活PTR1转录。
由此,研究者揭示了一个双向调控环路:PTR1通过泛素化降解WC1来抑制类胡萝卜素合成,而WCC(WC1/WC2)又转录激活PTR1的表达,二者相互制约,共同维持类胡萝卜素代谢稳态。
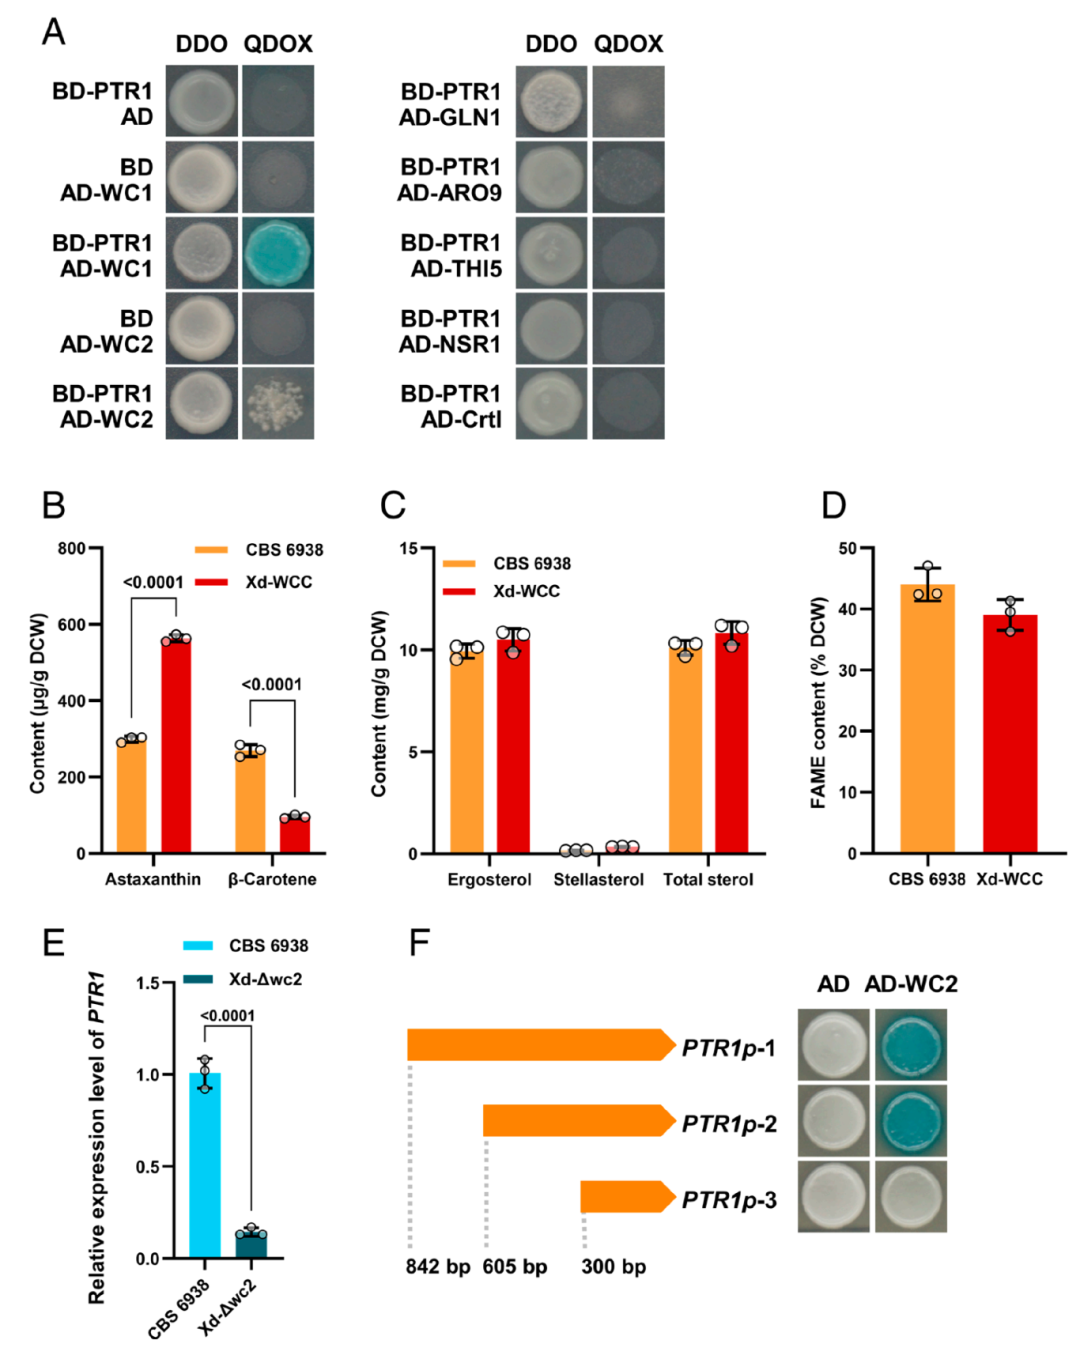
图4 | PTR1与WC1的双向调控。(A) PTR1与候选互作蛋白的Y2H验证;(B) Xd-WCC菌株及亲本菌株的虾青素和beta-胡萝卜素含量;(C) 甾醇含量;(D) 总脂肪酸含量;(E) Xd-delta-wc2中PTR1的qRT-PCR结果;(F) Y1H验证WCC与PTR1启动子的互作。
4. PTR1与WCC形成双向调控环路维持类胡萝卜素稳态
为全面解析PTR1的调控网络,研究者通过Y2H文库筛选鉴定了10个与PTR1具有强物理互作的蛋白,包括信号识别颗粒组分SRP72、蛋白激酶抑制剂SKB1、果糖-1,6-二磷酸醛缩酶FBA2、法尼基焦磷酸合酶ERG20、精氨基琥珀酸合酶ASS、多糖磷酸糖蛋白PPG4、阿魏酸酯酶FAE2、乙醇脱氢酶ADH4及两个假定蛋白HP3和HP4等(图5A)。
泛素化组学分析进一步证实FBA2是PTR1的泛素化底物(K259位点泛素化水平降低),提示PTR1通过翻译后修饰调控糖酵解和萜类合成前体供应。
通过对互作蛋白进行基因破坏或过表达的功能表征,研究者发现:
HP3破坏:虾青素升高(402 μg/g DCW),麦角甾醇升高(11.1 mg/g DCW);
HP4破坏:虾青素升高(356 μg/g DCW);
ADH4破坏:虾青素升高(369 μg/g DCW);
ALY破坏:麦角甾醇升高(11.6 mg/g DCW),总脂肪酸大幅降低(21% vs. 44% DCW),脂肪酸组成改变;
PPG4过表达(在delta-ptr1背景中):虾青素升高,但麦角甾醇降低。
这些结果表明,PTR1通过模块化、多蛋白的调控系统,在直接泛素化WCC之外,通过多个互作蛋白精细调控中央代谢和代谢物分配。其中,HP3、HP4、ADH4和PPG4与虾青素调控相关;HP3和PPG4与甾醇调控相关;ALY同时影响甾醇和脂质组成。
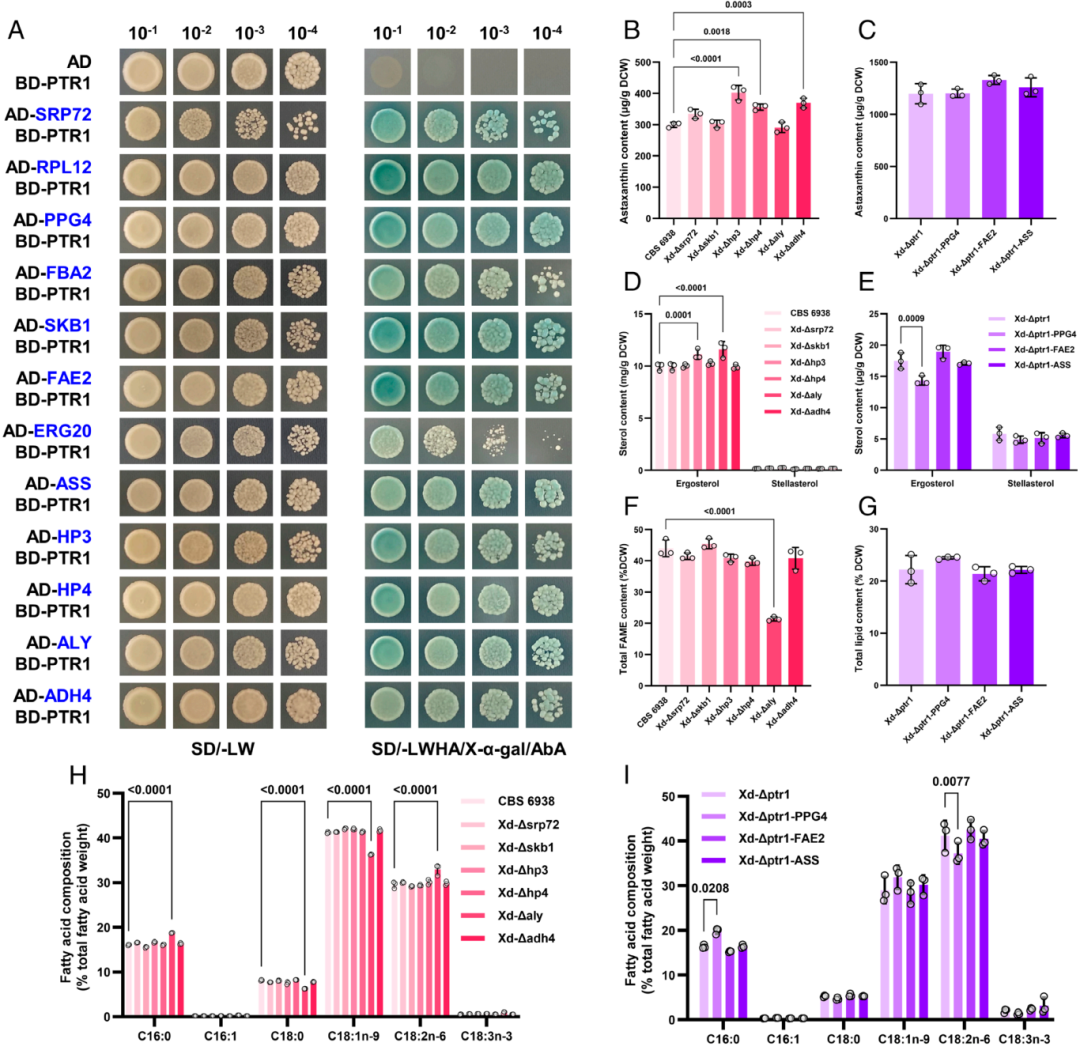
图5 | PTR1互作蛋白的功能表征。(A) Y2H文库筛选获得的互作蛋白;(B-C) 各菌株虾青素含量;(D-E) 麦角甾醇和新星甾醇含量;(F) 总脂肪酸含量;(G) 总脂含量;(H-I) 脂肪酸组成。
研究总结
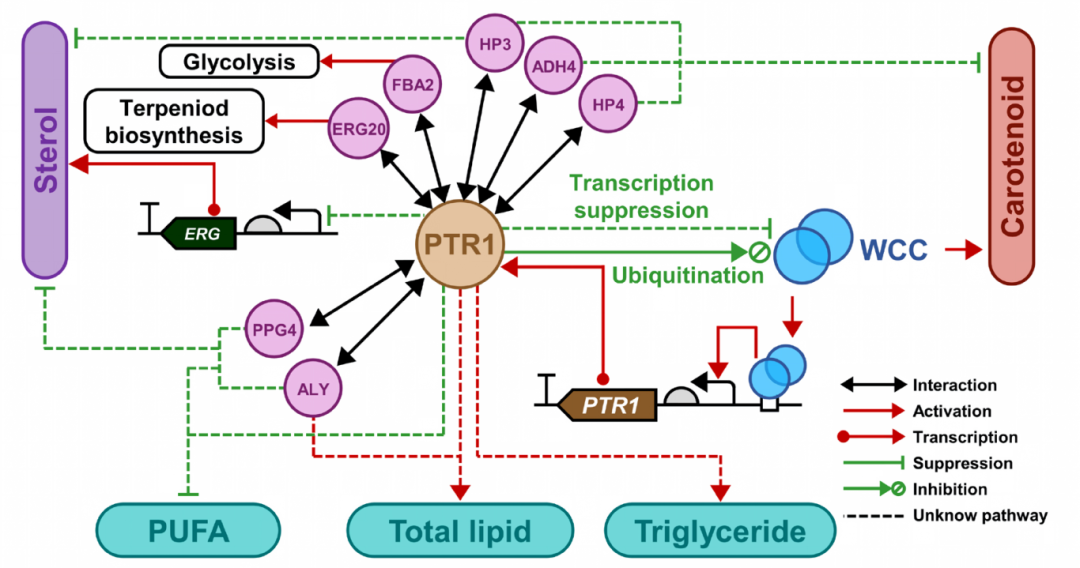
图6 | PTR1介导的类胡萝卜素、甾醇和脂质代谢协调调控模型。
本研究鉴定出E3泛素连接酶PTR1,通过泛素化降解转录因子WC1形成负反馈环,负调控虾青素合成;同时通过多个互作蛋白节点(HP3/ALY/PPG4等)分别协调甾醇和脂质代谢,实现三条竞争性通路的重编程。PTR1同源物在真核生物中保守,其失活是虾青素超产的必需条件,本研究为理解泛素介导的真核代谢调控提供了概念框架,同时为工业育种提供了自上而下的改造靶点。
欧易生物技术支持
本研究由中国科学院青岛生物能源与过程研究所王士安团队完成。黄睿林博士研究生为第一作者,王士安研究员为通讯作者。该研究得到了国家重点研发计划、国家自然科学基金和中国科学院战略先导专项的支持。
原文链接
Huang R, Wang J, Ding R, Liu Y, Su J, Chen Z, Fan Y, Li F, Wang L, Liu X, Wang S. A conserved E3 ubiquitin ligase rewires carotenoid, sterol, and lipid metabolism in Xanthophyllomyces dendrorhous. Proc Natl Acad Sci U S A. 2026 Apr 28;123(17):e2530496123. doi: 10.1073/pnas.2530496123. Epub 2026 Apr 24. PMID: 42030148; PMCID: PMC13123865.